

П. Ф. Кузнецов (Самарский государственный социально-педагогический университет). ДОМЕСТИКАЦИЯ ЛОШАДИ В БРОНЗОВОМ ВЕКЕ ВОСТОЧНОЙ ЕВРОПЫ. ./ТРУДЫ VII (XXIII) ВСЕРОССИЙСКОГО АРХЕОЛОГИЧЕСКОГО СЪЕЗДА. В трех томах. Том I, Красноярск, 6–10 октября 2025 г. Красноярск, СФУ 2025. Стр. 479-481.
Одомашнивание животных в древности было важнейшим шагом в истории человечества по созданию комфортной антропогенной среды. Необходимо отметить, что одомашнивание кардинальным образом отличается от приручения. Для одомашненных животных искусственная, созданная человеком среда обитания становится естественной. Высшая форма одомашнивания – полная изоляция от своей дикой формы. Особенно важно, что для вероятности одомашнивания необходима генетическая предрасположенность вида к адаптации в антропогенной среде. Такая способность в живой природе является, скорее, исключением, чем правилом. Известно порядка 4 500 теплокровных млекопитающих видов животных. Из них одомашнены или частично одомашнены всего 16 видов, что составляет исчезающе малые 0,36 %. Лошадь на сегодняшний день остается последним из доместицированных видов.
Палеогенетические исследования костных остатков лошадей уверенно показали одомашнивание в конце III тыс. до н. э. единственного генетического профиля (кластера), именуемого DOM-2. Ареал обитания диких лошадей, прямых предшественников домашних, располагался к северу от гор Кавказа и к западу от Уральских гор [The origins..., 2021, fig. 1]. В период VI – нач. III тыс. до н. э. был период сокращения популяций лошадей (эффект «бутылочного горлышка»), который прекратился после XXVII в. до н. э. [Widespread..., 2024, p. 819]. Вероятно, в это время на территории Восточноевропейской равнины и появилась популяция лошадей, генетически склонная к приручению. Отличие нового, уже домашнего генетического кластера DOM-2 от всех предшествующих популяций лошадей связано с появлением у них двух генетических мутаций:
1) изменение гена, кодирующего белок-протеин Gasdermin C;
2) мутация, затрагивающая один из генов «цинковых пальцев» – ZFPM1 [The origins..., 2021, p. 637, 638].
Первая мутация сделала для лошади естественным перемещение в галопирующем аллюре, а вторая способствует узнаванию и запоминанию [Кузнецов, Фоменко, 2022, с. 196–198]. Две мутации расширили возможность для доместикации и последующей селекции.
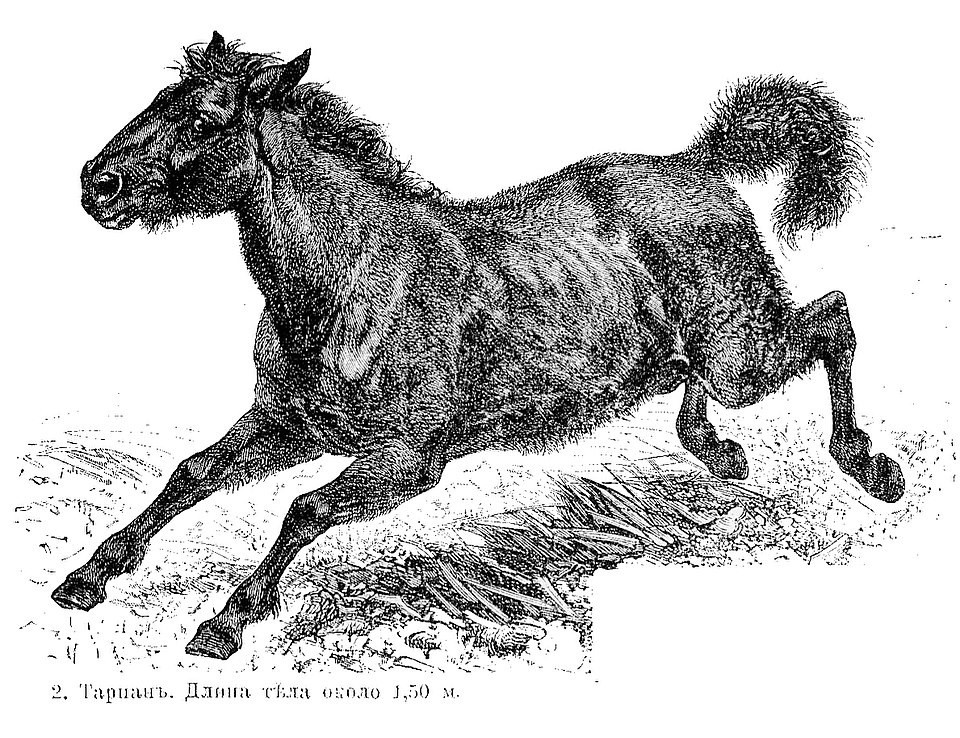
По палеогенетическим данным, после XXIII/XXII веков до н. э. фиксируется близкородственное смешение и стимулирование акселерации молодых особей [Widespread..., 2024, p. 823]. Это есть прямое свидетельство селективного отбора человека и изоляция домашних лошадей от диких подвидов. Каким образом была возможна такая изоляция? Дикие лошади – тарпаны – обитали в степной зоне Восточной Европы вплоть до XIX в. [Паллас, 1773, с. 316–318; Кёппен, 1895,с.170, 171; Эверсман, 1850, с. 215–220]. Ареалом их обитания вплоть до Нового времени оставалась степная и полупустынная зоны Восточной Европы и Западной Азии. В открытой степи реальной угрозой существования их поголовья был только человек. Напротив, в лесостепной зоне исторические свидетельства существования тарпана отсутствуют. Более того, на однослойном памятнике Лебяжинка III лесостепного Поволжья, датированном по углю 5 660 – 5 480 Cal. BC (95,4 %) в остеологическом определении 168 образцов костей, лошади отсутствуют [Овчинникова, 1995, с. 188, 189]. В 220 км к ЮВ от поселения Лебяжинка III находится Турганикское поселение, где в слое раннего бронзового века есть кости лошади кластера Turg, который наиболее близок кластеру DOM-2 [The origins..., 2021]. Установлено, что уже в начале голоценовой эпохи ареал дикой лошади был фрагментированным, а в ряде регионов она полностью вымерла [Голоценовое..., 2020, с. 557, 558]. Таким образом, очень высока вероятность, что именно лесостепная зона Восточноевропейской равнины имела мозаичные ареалы обитания диких лошадей. Мозаичность обитания и стала естественным изолятом для первых популяций собственно домашних лошадей. Ни о каком пастушеском коневодстве нет прямых свидетельств, а также доказательств. Да и конституция первых домашних лошадей не способствовала развитию верховой езды. Более того, установлено, что анатомические особенности всадников появляются в Восточной Европе не ранее финального этапа позднего бронзового века [Бужилова, 2010, с. 124].
Об основном ареале приручения лошади косвенно свидетельствуют и находки наиболее древних псалиев именно в лесостепном Доно-Волго-Уральском регионе [Bochkarev, Kuznetsov, 2023, fig. 3).
Были ли возможности для одомашнивания лошади в более раннюю эпоху энеолита, в VI–V тыс. до н. э., как это предполагалось исследователями в 70-е – 80-е гг. XX в.? Попытки приручения лошадей были всегда, что обусловлено естественным стремлением человека, как носителя творческого начала, к комфортному изменению окружающей среды. В особенности это относится к людям ботайской культуры, чья экономика базировалась на эксплуатации ресурса ареалов обитания лошади. Но эта реализация была возможна только на уровне приручения отдельных особей, так как генетической предрасположенности к одомашниванию у ботайских лошадей не было. Об этом свидетельствует отсутствие близкородственного спаривания [Widespread..., 2024, p. 822]. Но высокая репродуктивная активность ботайских лошадей в молодом возрасте может косвенно свидетельствовать о попытке контроля над стадами и об избирательной охоте. Впрочем, повышенная репродуктивная активность молодых особей могла быть и остаточным эффектом «популяционной волны», которая усиливается вследствие благоприятной климатической обстановки [Четвериков, 1980, с. 80–83]. Об этом же свидетельствует локальность генетических кластеров лошадей ботайской культуры по отдельным памятникам: Ботай, Новоильинка, Красный Яр, Терсек [Widespread..., 2024, Supplem. Tables]. Эти кластеры заменили предполагаемый единый ботайский профиль лошадей DOM-1 (первое одомашнивание), который в новых генетических определениях не используется.


